日本東京科學大學(Science Tokyo)細胞生物學中心的小谷哲也客座講師與中戸川仁教授,攜手大阪大學研究所醫學研究科久萬曉子特任副教授組成跨機構團隊,於2026年7月29日將研究成果率先上線,並於8月4日正式刊載於《美國國家科學院院刊》(PNAS)第123卷第31期。
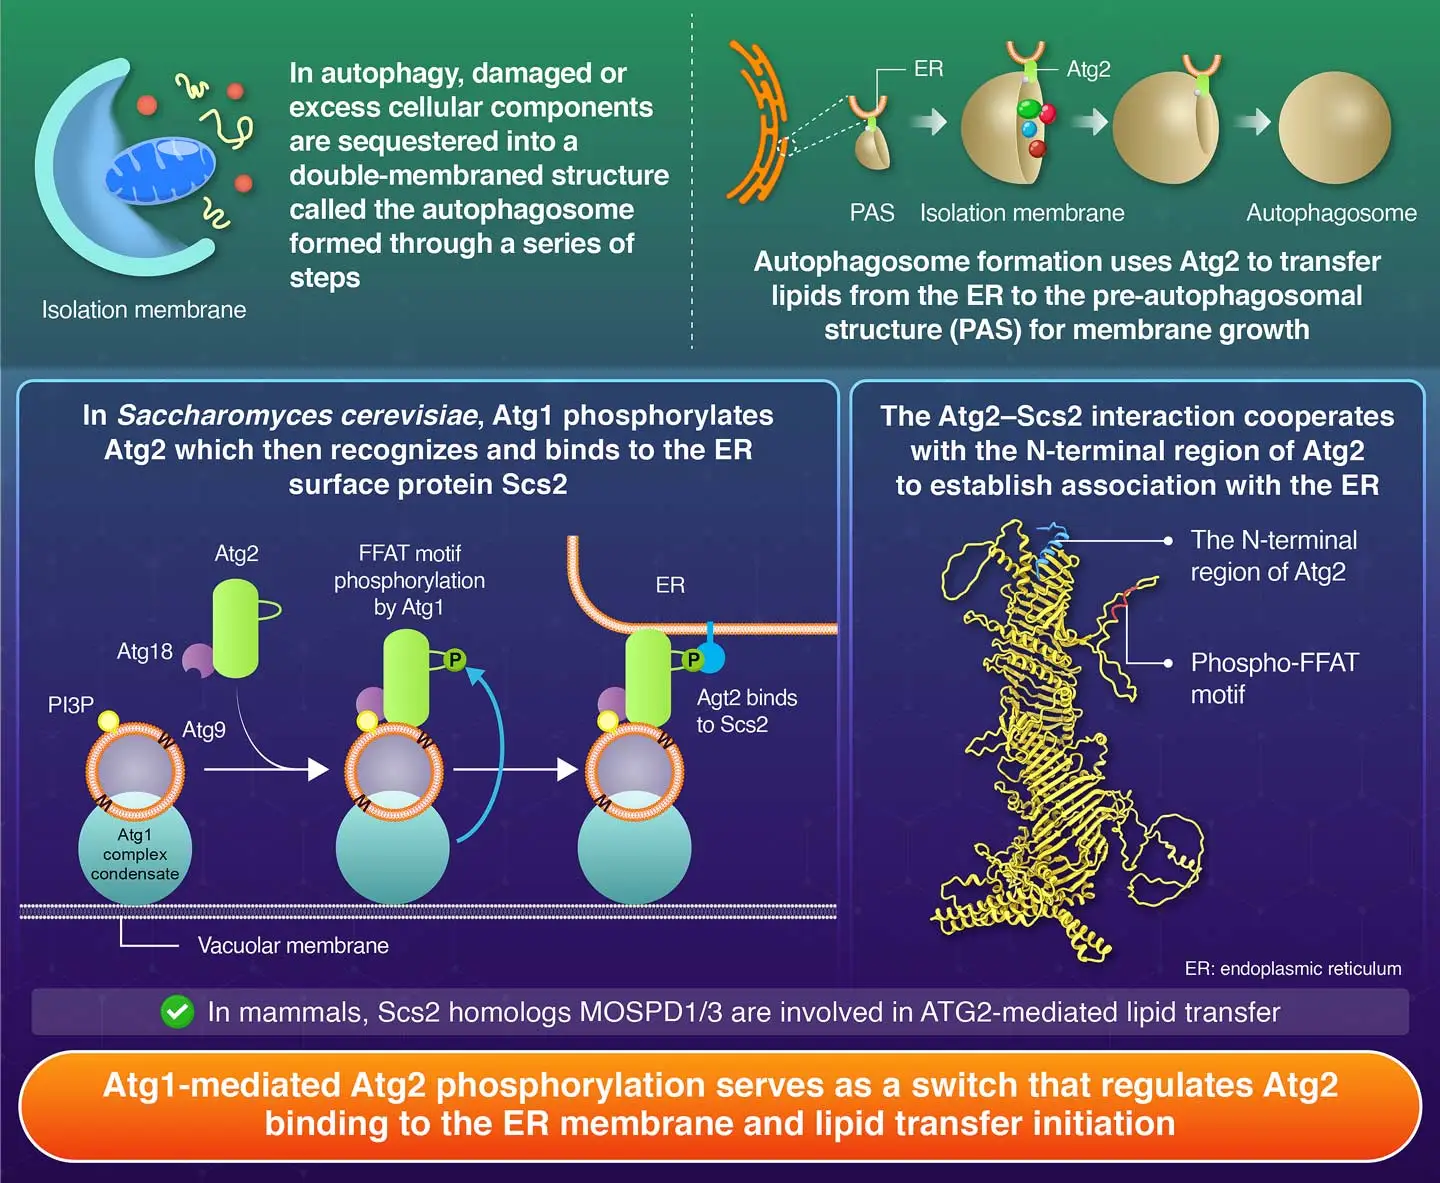
這項研究首次完整揭示了自噬相關蛋白 Atg2 與內質網(ER)結合的雙重分子機制,特別是蛋白激酶 Atg1 透過磷酸化 Atg2 的「FFAT模體」(兩苯丙氨酸酸性序列),作為時空開關精準控制脂質傳輸的過程。
研究團隊以釀酒酵母(Saccharomyces cerevisiae)為模式生物發現,位於細胞質中的游離 Atg2 本身並不會自動與內質網結合;唯有在 Atg2 被招募到「前自噬體結構」(PAS)後,才會被 Atg1 磷酸化啟動,進而與內質網上的 Scs2 蛋白(屬於 VAP 蛋白家族)結合,拉近 PAS 與 ER 的距離以利脂質傳輸。
更關鍵的是,這套以「磷酸化 FFAT 模體」介導 Atg2-VAP 互動作用的高度保守機制,也在人類 HEK293T 細胞(永生化人類胚胎腎臟細胞株)中的 ATG2A/B 與其同源蛋白 MOSPD1/3 之間得到驗證。這代表從真菌到哺乳動物,這條自噬體形成的核心調控路徑在演化上被完整保留,是所有真核生物自噬體形成的關鍵環節。
本事件本質為純基礎細胞生物學與分子機制突破,並非商業競爭或地緣政治博弈,因此不宜以利益角力框架強行詮釋。真正的情報價值在於拆解這條「Atg1-Atg2-VAP」軸線的科學脈絡、結構性意義與長程影響。
### 一、自噬研究的歷史演進與典範累積
自噬(autophagy)一詞源自希臘文「self-eating」,1960年代由Christian de Duve透過電子顯微鏡觀察溶酶體時首次提出,並於1974年使其獲頒諾貝爾生醫獎。然而,自噬體形成的分子機制長期處於黑箱狀態。1990年代日本學界率先於酵母中篩選出自噬相關基因(ATG),開啟了「ATG基因家族」研究的黃金年代。2016年大隅良典因闡明自噬機制獲頒諾貝爾生醫獎,標誌著自噬從細胞生物學的邊緣議題躍升為主流醫學研究的核心。
此次東京科學大學與大阪大學團隊接續的突破,屬於「後大隅良典時代」對自噬體形成過程細節的精密拆解——研究的核心矛盾在於,先前學界已知道 Atg2 負責將 ER 脂質輸送給新生自噬體,但對於「Atg2 如何精準找到 ER、如何被啟動、如何避免脂質誤送」這三大問題一直缺乏完整的分子解釋。
### 二、雙重機制的深層結構意涵
研究團隊提出的「雙重錨定模型」是本文最具突破性的結構性發現——Atg2 透過兩個獨立的結構區域與 ER 結合:
當這兩個機制同時被破壞時,會導致幾乎完全的自噬失能;單獨破壞任一機制,則僅產生部分自噬活性下降。這種「功能冗餘(functional redundancy)」設計,正是細胞為何能在嚴苛環境下仍維持基本自噬功能的演化智慧,也是自噬作為細胞生存最後防線的結構性基礎。
### 三、跨物種保守性的科學意涵
從酵母 Scs2 到人類 MOSPD1/3 的驗證結果,意味著這套磷酸化調控邏輯可能是所有真核細胞共通的自噬「開關」。這個發現的深層意義在於:未來若要以自噬為標靶開發藥物,研發人員將擁有一個跨物種通用的分子把手,大幅降低臨床前驗證的轉譯落差。
國際制裁與出口管制警報
🟠 高度管制 (HIGH RISK)資料來源:OpenSanctions / Dutch Export Control
⚠️ 合規與地緣風險要點: 荷蘭政府與美國協議管制 Twinscan NXT:1970i/1980i 等浸潤式 DUV 及全部 EUV 光刻機向特定受限制國家出口與維修授權。
戰略貿易流向與供應鏈依賴度
HS 8507資料來源:UN Comtrade 聯合國商品貿易統計庫 · 全球市場規模 $1,300 億美元 / 年 (複合成長率 >24%)
本研究成果的長程前瞻意義,須置於自噬研究近30年的典範累積中審視——從1990年代酵母基因篩選、2016年大隅良典諾貝爾獎、到當前分子機制的精密拆解,自噬研究正從「現象描述」邁入「工程化操控」的新典範。
針對學界、投資界與產業政策制定者的具體行動建議如下:
01 起因觸發:東京科學大學與大阪大學跨機構團隊於PNAS發表Atg2-ER互動作用分子機制
02 一階傳導:細胞生物學、結構生物學與自噬研究領域將以此為新基準文獻重啟研究方向
03 二階擴散:製藥與生技產業開始評估「磷酸化FFAT模體」作為新藥標靶的可專利性與授權價值
04 宏觀終局:10至20年後可能催生新一代精準調控自噬的標靶藥物,衝擊神經退化、代謝疾病與抗衰老醫療市場結構
跨事件因果網路圖譜 1 驗證節點
AI 驗證因果鏈條 · 可拖曳節點 · 點兩下開啟文章